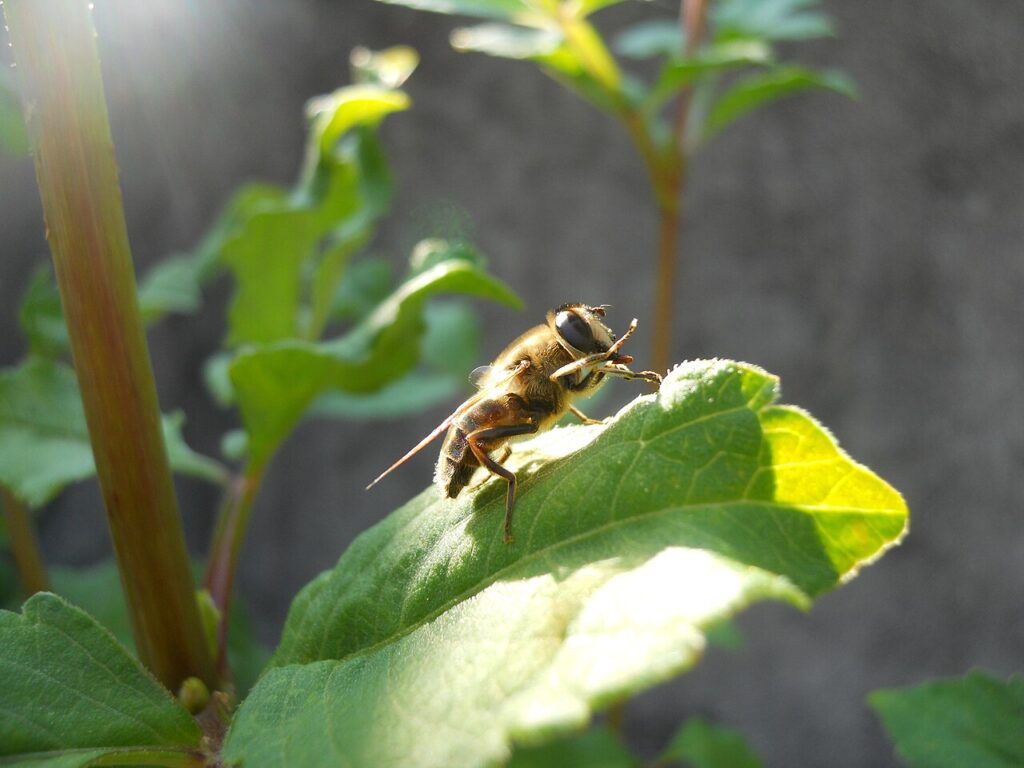
Parleremo di un esperimento apparentemente marginale, ma che introduce una questione fondamentale: in che modo un organismo distingue ciò che accade nel mondo da ciò che esso produce muovendosi? Cioè tratteremo della mosca Eristalis, capace di restare sospesa in volo e di ruotare il capo.
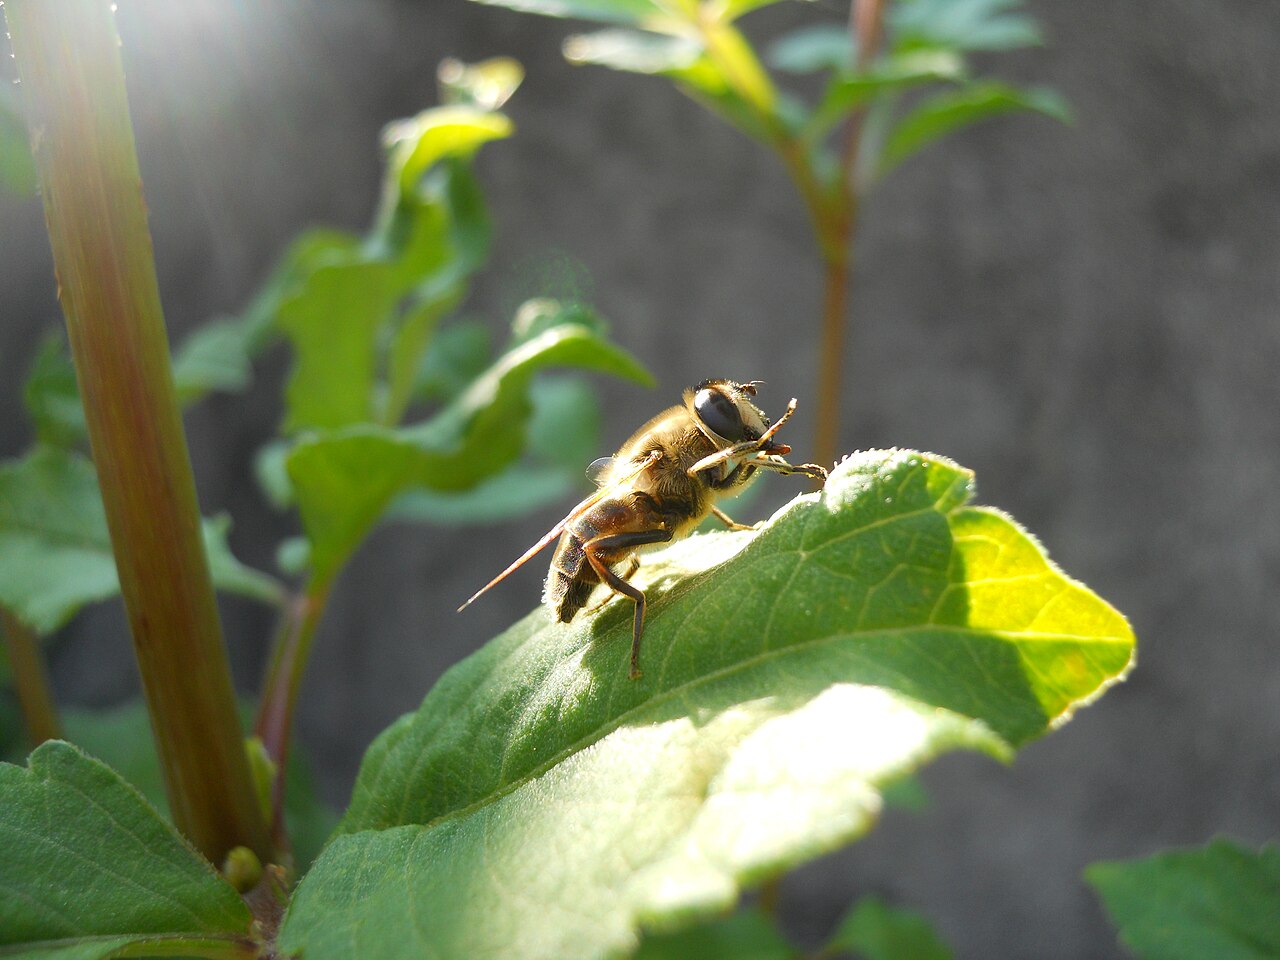
Erich von Holst e Horst Mittelstaedt, nel 1950, studiarono il comportamento di questa mosca ruotandole la testa di 180 gradi e fissandola al torace. L’esperimento intese chiarire il rapporto fra afferenza ed efferenza: da un lato gli impulsi che dagli organi di senso giungono al sistema nervoso, dall’altro quelli che dal sistema nervoso muovono verso i muscoli. La questione, dunque, non riguarda effettivamente solo il movimento, ma il modo in cui il vivente riesce a orientarsi in un ambiente che muta e, al tempo stesso, viene modificato dalla sua stessa attività. Il filosofo Spinoza aveva intuito questo aspetto: i modi!
In questo contesto si comprende l’importanza di von Holst. Figura meno nota rispetto a Konrad Lorenz, ma decisiva per lo sviluppo dell’etologia e della fisiologia del comportamento, egli si oppose alla concezione riflessologica classica, secondo la quale il comportamento sarebbe riducibile a una catena di stimoli e risposte. Il vivente non è un meccanismo passivo che reagisce agli urti del mondo esterno, ma un sistema attivo, atto ad anticipare, prevedere e regolare le conseguenze sensoriali dei propri movimenti. Cartesio ha sbagliato su tutti i fronti.
Il sistema nervoso non deve soltanto ricevere stimoli, ma deve sapere soprattutto quali stimoli sono prodotti dal corpo medesimo. Se un animale si muove, le immagini scorrono sulla retina, i recettori tattili vengono sollecitati, l’equilibrio cambia; tuttavia l’animale non interpreta tutto ciò come se il mondo intero si fosse mosso: il mondo non sta cambiando: sono io che, muovendomi, lo vedo muoversi. Vi deve essere dunque qualcosa, un dispositivo di distinzione, o meglio di confronto, che consenta di separare lo stimolo esterno dallo stimolo prodotto dalle mie azioni. L’esperimento della mosca dalla testa storta rende evidente tale postulato.
Quando una mosca viene posta in un cilindro decorato da strisce verticali bianche e nere, e il cilindro viene fatto ruotare, l’animale tende a muoversi nella stessa direzione della rotazione: esso cerca di stabilizzare il proprio campo visivo. Questo è il cosiddetto riflesso optomotorio. Se l’immagine scivola sulla retina, l’animale compie movimenti compensatori, come se dovesse trattenere il mondo nella sua stabilità. Il mondo cambia soprattutto se non si muove ma rimane fermo e a muoversi è la mosca; in questo caso lo scivolamento dell’immagine sulla retina non segnala un movimento del mondo, bensì una conseguenza del movimento dell’animale. In condizioni normali il sistema nervoso tiene conto di questa differenza e inibisce la risposta optomotoria. C’è la coscienza di muoversi. La mosca, cioè, non corregge ogni variazione retinica come se fosse prodotta dall’esterno; la mosca sa di muoversi.
La rotazione della testa rompe questo equilibrio. La mosca con la testa rovesciata riceve sulla propria retina uno scivolamento dell’immagine che per il suo stesso corpo assume un significato invertito. Nel tentativo di correggere la perturbazione, essa compie un movimento che accresce l’errore; cioè la correzione diviene nuova fonte di squilibrio. Perciò l’animale gira, oscilla, procede in modo disordinato, fino a immobilizzarsi in una postura innaturale: è come se l’inaspettato immobilizzasse. Non si tratta di una semplice incapacità motoria: il corpo è ancora atto a muoversi, ma il sistema che deve interpretare il rapporto fra movimento proprio e mutamento sensoriale è stato alterato. Il riflesso optomotorio non giustifica molto: se il riflesso optomotorio bastasse da solo a spiegare il comportamento della mosca, ci si aspetterebbe una semplice compensazione: l’immagine scivola sulla retina, la mosca si muove per correggere; ovviamente, avendo la testa in quella posizione, la compensazione aumenterebbe l’errore a dismisura, ma la mosca non si fermerebbe come per segnalare che si renda conto che qualcosa non va.
Tutto ciò significa che nella spiegazione dei movimenti di una mosca, di un vivente, lo schema stimolo visivo → risposta motoria automatica risulta erroneo; non c’è alcun forma di meccanismo, ma nei movimenti anche minimi l’organismo è attivo: interpretando e scegliendo. Se io mi muovo in un certo modo, l’immagine del mondo sulla retina cambierà in un certo modo a me prevedibile. Riassumendo, quindi la mosca riceve un segnale visivo che, rispetto al corpo, ha significato invertito; quando prova a correggere, sbaglia il movimento: invece di ridurre l’errore, lo aumenta: come se una persona guidasse un’auto con lo sterzo invertito, vedendo di andare fuori traiettoria, gira per correggere, però, ovviamente, la correzione peggiora la situazione.
Così von Holst e Mittelstaedt introdussero la nozione di copia efferente. Quando il sistema nervoso invia un comando motorio ai muscoli, una copia di tale comando viene inviata anche a un sistema comparatore. Tale copia consente di prevedere quali effetti sensoriali dovranno derivare dal movimento eseguito. Se l’effetto sensoriale corrisponde a ciò che era previsto, esso viene riconosciuto come prodotto dall’azione propria; se invece non corrisponde, viene attribuito a un evento esterno. Questo meccanismo, meccanico, permette la libertà stessa di movimento.
In altri termini, la percezione non è un semplice ricevere. Essa implica una sottrazione, una comparazione, una neutralizzazione di ciò che il corpo stesso produce. Il mondo percepito non si dà come una somma immediata di stimoli, ma come il risultato di un’operazione regolativa nella quale l’organismo distingue la reafferenza, cioè lo stimolo generato dal proprio movimento, dall’ex-afferenza, cioè lo stimolo proveniente dall’esterno. La percezione è una facoltà attiva possiamo sostenere.
© 2026 Giancarlo Petrella. Tutti i diritti riservati.
Lascia un commento