Neuroni, muscoli e organi raccolgono informazioni dall’ambiente, le elaborano e producono una risposta adeguata; ma anche le cellule degli organismi pluricellulari semplici possono comunicare. Capire come si sia passati da questi meccanismi elementari alle reti nervose articolate e complesse significa di per sé ripercorrere tappe essenziali dell’evoluzione animale.
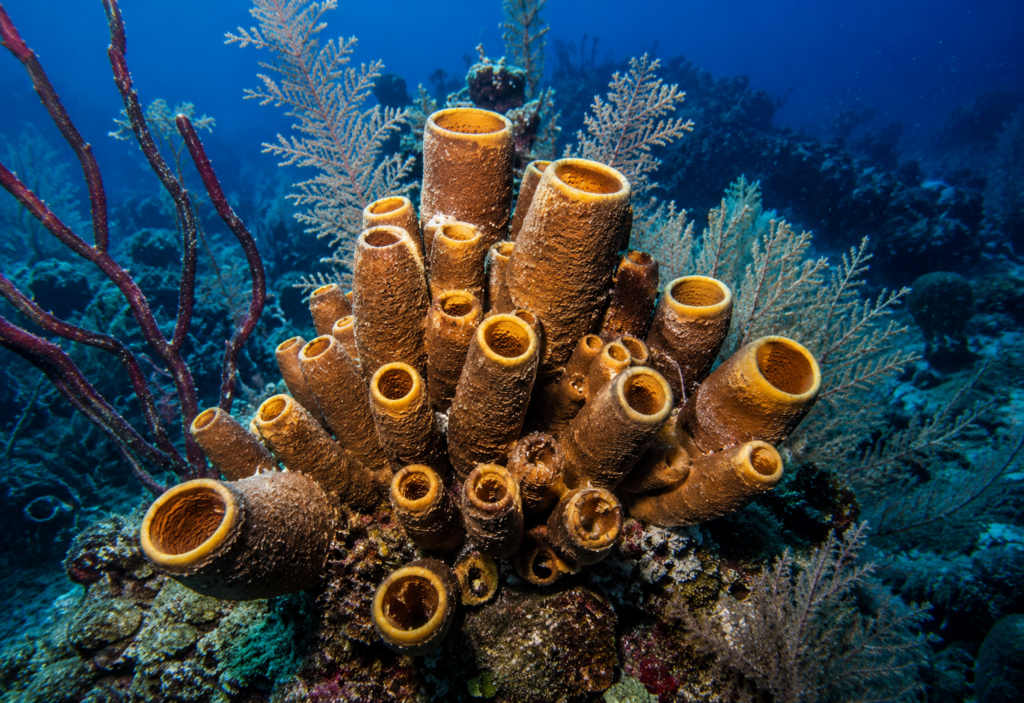
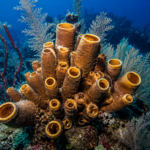
Tra gli animali che ci aiutano a comprendere le origini di questo meccanismo troviamo le spugne, appartenenti al phylum Porifera. Le spugne non possiedono veri neuroni né muscoli, ma ciò non significa che siano in balia dell’ambiente e incapaci di reagire: grazie a segnali chimici e variazioni nella concentrazione di ioni, in particolare il calcio (Ca²⁺), coordinano fenomeni come le contrazioni e la regolazione del flusso d’acqua; ovvero le loro cellule comunicano. Le spugne possiedono, inoltre, proteine contrattili, per esempio la miosina, utilizzate per modificare la forma stessa delle cellule e controllare, secondo quanto detto, l’apertura dei canali attraverso cui l’acqua circola. Tali fenomeni indicano che componenti molecolari necessari alla comunicazione e al movimento fossero già presenti prima dell’apparizione di neuroni e muscoli veri e propri.
Attuando dei confronti fra gruppi di animali, abbiamo ulteriori indizi. I Placozoa sono animali formati da pochi tipi di cellule, privi di un vero sistema nervoso, estremamente semplici, e non hanno muscoli; ma già i Ctenofori e gli Cnidari possiedono cellule nervose e muscolari. Infine, i Bilateria, il grande gruppo che comprende anche gli artropodi, hanno generalmente una maggiore centralizzazione del sistema nervoso. Tuttavia non si ha una vera scala, tra cosiddetti organismi inferiori a quelli superiori: l’evoluzione è un processo ramificato in cui differenti linee hanno attuato soluzioni diverse a medesimi o diversi problemi a partire da antenati comuni.
Una questione fondamentale e discussa è la nascita stessa dei primi neuroni. Secondo l’ipotesi definita Porifera-first, le spugne rappresenterebbero la linea che si separò più precocemente dalle altre e la loro assenza di neuroni sarebbe compatibile perciò con una condizione arcaica, priva di sistema nervoso. Un’altra ipotesi, detta Ctenophora-first, colloca diversamente i Ctenofori alla base dell’albero evolutivo. Quest’ultima possibilità apre molteplici spunti di riflessione: i sistemi nervosi si sarebbero cioè evoluti indipendentemente in differenti linee animali oppure alcune linee, quali per esempio le spugne, potrebbero aver perso nel corso dell’evoluzione caratteristiche presenti nei loro antenati: principio economico, cosa può servire a degli animali come le spugne dei muscoli o un sistema nervoso centrale?
La perdita di strutture complesse, che hanno avuto bisogno di migliaia o persino milioni di anni e uno sforzo disumano, non è un’eventualità estranea all’evoluzione, soprattutto quando esse cessano di rappresentare un vantaggio per l’organismo. Alcune spugne, per esempio, attraversano uno stadio larvale mobile, ove sono simili a piccoli girini; si ha uno stadio larvale dotato di strutture sensoriali e nervose utili a orientarsi nell’ambiente. Tuttavia, una volta individuato un substrato adatto, si ancorano al fondo e conducono una vita sessile, andando incontro a una profonda riorganizzazione e a una sorta di regressione di strutture divenute oramai poco utili. In questa prospettiva, anche l’apparente semplicità dei Porifera potrebbe non rappresentare necessariamente una condizione ancestrale, ma essere il risultato, almeno in parte, di una semplificazione evolutiva. Rimane perciò aperta una delle questioni fondamentali e più discusse nello studio dell’evoluzione animale: quando e in quale linea comparvero i primi neuroni e, soprattutto, il sistema nervoso ebbe un’unica origine? Oppure emerse più volte, indipendentemente, nel corso dell’evoluzione?
Va da sé che la comunicazione cellulare sia più antica dei neuroni: una cellula può percepire variazioni e modificare il comportamento senza la necessità di possedere un sistema nervoso; tuttavia, come spesso accade, questi meccanismi si sono progressivamente specializzati. Un modello possibile prevede una condizione iniziale nella quale una stessa cellula svolge sia una funzione sensoriale sia una funzione contrattile; successivamente, cellule specializzate nella percezione degli stimoli avrebbero potuto comunicare con cellule dedicate alla contrazione, con un conseguente aumento dell’efficienza. Di poi, l’interposizione di cellule nervose avrebbe consentito di trasmettere i segnali più rapidamente e su distanze maggiori, creando il circuito formidabile stimolo → cellula sensoriale → neurone → muscolo. Infine, con la comparsa degli interneuroni e di reti sempre più articolate, gli organismi avrebbero acquisito una crescente capacità di integrare informazioni differenti e produrre comportamenti complessi.
Un passaggio analogo, analogo alla specializzazione delle cellule accennate, riguarda l’evoluzione della muscolatura. Le spugne non possiedono veri tessuti muscolari, pur se utilizzino proteine contrattili per compiere movimenti e regolare il proprio corpo. In altri gruppi animali sono comparsi, invece, sistemi muscolari specializzati, atti a produrre movimenti più rapidi e precisi. L’analogia non è fuorviante o casuale: la relazione tra sistema nervoso e muscolatura è diventata, nel corso dell’evoluzione, sempre più stretta; ovvero, percepire rapidamente un pericolo è vantaggioso soprattutto se l’animale dispone di strutture capaci di trasformare subitamente il segnale nervoso in movimento. Tale integrazione tra percezione, elaborazione e azione raggiungerà nei Bilateria e, in particolare, nei nostri amati artropodi livelli eccezionali.
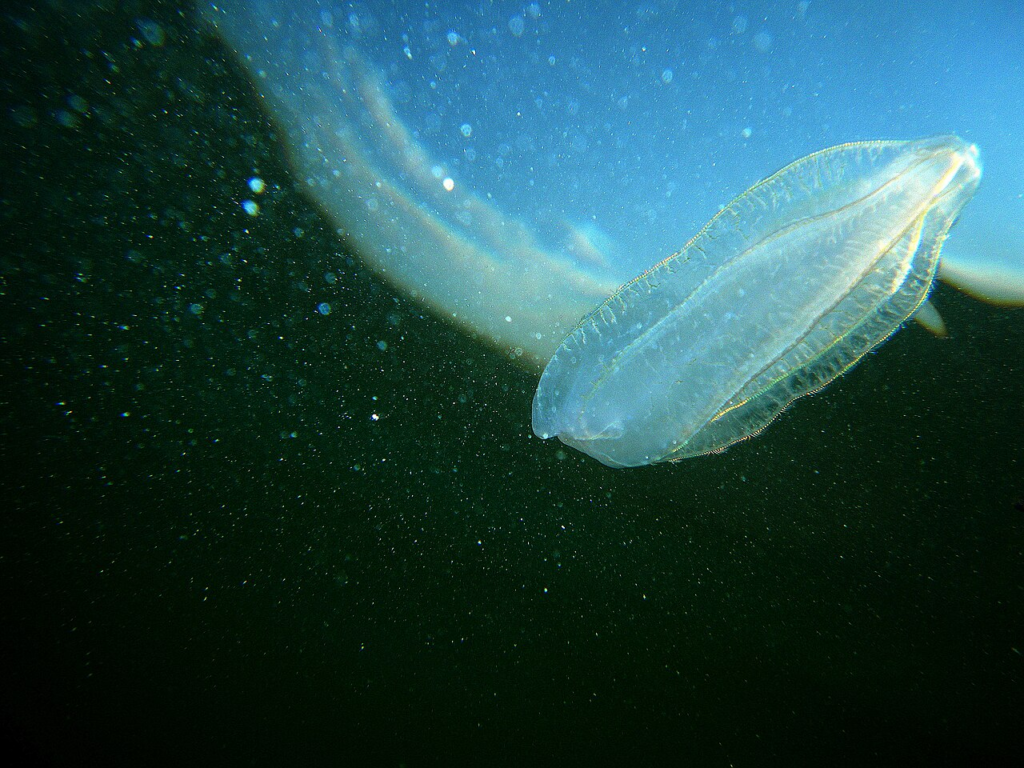
Per comprendere tutti questi discorsi parliamo dei Ctenofori, per comprendere proprio le prime fasi di questa storia che narriamo; i Ctenofori sono chiamati gelatine pettinate, sono animali esclusivamente marini col corpo tendenzialmente trasparente e gelatinoso; ma, nonostante questo aspetto, non sono meduse. Un’altra caratteristica interessante è la presenza di otto file di strutture formate da ciglia, strutture chiamate pettini o cteni, il cui movimento permette all’animale di nuotare; ovviamente, si ha un movimento coordinato. Il passaggio della luce attraverso queste file può produrre riflessi iridescenti che non devono essere confusi con la bioluminescenza: diversi Ctenofori sono effettivamente capaci di produrre luce, ma i colori simili a un arcobaleno sui pettini sono dovuti alla rifrazione e alla diffrazione della luce.
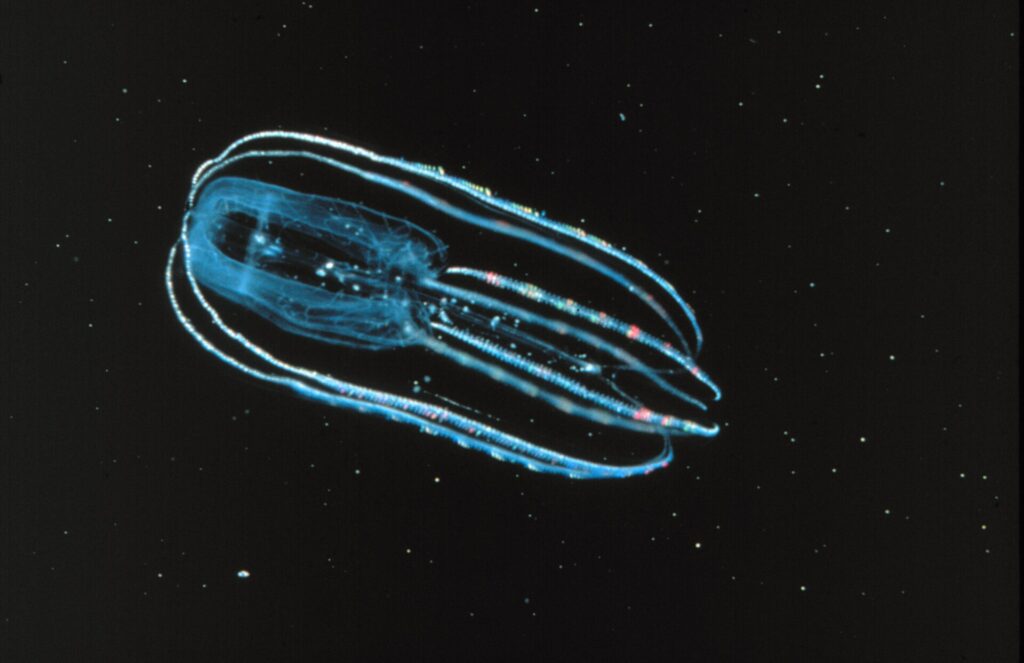
I Ctenofori sono principalmente predatori e si nutrono di piccoli organismi planctonici. Varie specie catturano le prede attraverso cellule adesive chiamate colloblasti, soluzione alternativa e diversa dai cnidociti urticanti tipici degli Cnidari. Come avviene spesso ci sono delle eccezioni e strategie alimentari diverse all’interno dello stesso gruppo, dacché vivono nei mari di tutto il pianeta e possono occupare ambienti molto diversi: dalle acque superficiali alle profondità oceaniche. Numerose specie sono ermafrodite e possiedono quindi strutture riproduttrici maschili e femminili nello stesso individuo; alcuni esempi: Mnemiopsis leidyi, specie invasiva; Beroe ovata, predatore specializzato persino nella cattura di altri ctenofori; infine possiamo citare Pleurobrachia pileus, appartenente alle forme chiamate noci di mare.
Perché parlare di Porifera, Ctenofori e Cnidari? Studiare questi animali, organismi lontani dagli artropodi, permette di comprendere proprio da dove provengano determinate strutture che nei nostri amici raggiungono un livello straordinario di specializzazione. Nei Bilateria abbiamo insetti, aracnidi, crostacei e miriapodi che possiedono sistemi nervosi centralizzati, organi sensoriali specializzati e muscoli atti a controllare con grande precisione appendici articolate. Dietro lo scatto di un gambero, il volo di un insetto, la costruzione di una ragnatela si trovano molteplici storie evolutive iniziate ben prima della comparsa degli artropodi.
© 2026 Giancarlo Petrella. Tutti i diritti riservati.
Lascia un commento